

 QQ空间
 微信
 新浪微博
在“双碳”目标背景下,碳得率已成为评价细胞工厂的关键指标之一。乙酰辅酶A既是微生物代谢的关键中间体,也是多种工业化学品的共同前体。然而,微生物经糖酵解途径利用葡萄糖时,仅生成两分子乙酰辅酶A并释放二氧化碳,理论碳得率只有66.7%,这意味着约三分之一的碳原子被白白“烧”掉了,这是微生物碳代谢与生物炼制中最大的碳损失来源。
为了提升碳原子经济性,研究者们发展出多种“碳封存途径”,如非氧化糖酵解(NOG)及其变体SCTPK。这类途径能把葡萄糖定量地转化为乙酰磷酸(AcP)进而生成乙酰辅酶A,理论上碳得率更高。但问题随之而来:这些纯碳封存途径不产生还原力,而还原力(NADH/NADPH)驱动着数百种氧化还原反应,并可经呼吸链生成ATP,是影响微生物生长和代谢的重要因素。因此,碳得率与能量供给往往此消彼长,呈反向关系,无法平衡。
近日,山东大学微生物改造技术全国重点实验室赵广教授课题组针对这一核心矛盾,构建了ATHENA(杂合碳—能量自主平衡)动态代谢中枢,实现了碳封存与能量供给的实时自动平衡。
相关研究以“ATHENA: a dynamic metabolic hub balancing carbon economy and energy supply in microbial synthesis”为题发表于Nature Communications。
ATHENA以糖酵解途径中间体磷酸烯醇式丙酮酸(PEP)为核心节点,将其分流进入两个功能互补的模块:碳封存模块(CCM)通过羧化反应固定二氧化碳,把PEP转化为两分子乙酰辅酶A,碳得率高达133%;能量生成模块(EGM)经丙酮酸激酶和丙酮酸脱氢酶生成乙酰辅酶A并产生NADH与ATP。碳封存和能量生成模块由NADH响应调控网络统一指挥:当细胞内NADH充足时,自动强化CCM、抑制EGM,优先“省碳”;还原力不足时则切换到 EGM“补能”。两模块基因表达呈反相振荡,细胞在两种代谢状态间自主切换。
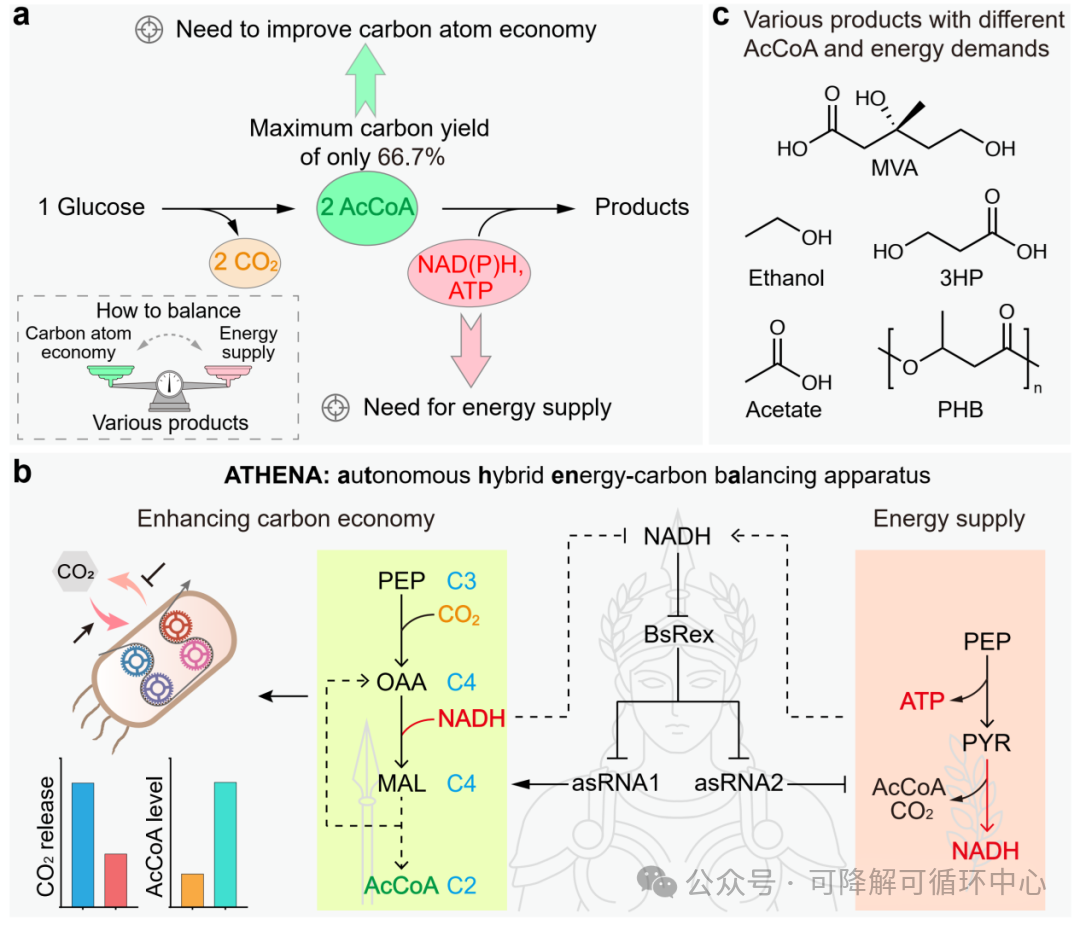
高碳得率大肠杆菌通用底盘细胞的设计。a,平衡碳得率和能量供应是微生物细胞工厂设计中的重要挑战;b,杂合碳—能量自主平衡装置(ATHENA)示意图;c,本研究合成的五种产品(乙酸、乙醇、甲羟戊酸MVA、3-羟基丙酸3HP、聚羟基丁酸酯PHB)。
结果显示,ATHENA 菌株胞内乙酰辅酶A浓度达野生型的3.75倍,二氧化碳排放降至约42%。针对乙酰辅酶A与能量需求各异的五种产品,ATHENA均显著提升了产量与得率:其中,乙酸和甲羟戊酸的碳得率均突破天然途径的理论上限,3-羟基丙酸、聚羟基丁酸酯和乙醇的产量与得率均较出发菌株提升4倍以上。
-
乙酸:菌株Q6549-Ac乙酸得率达到1.04 g/g葡萄糖,远超其天然理论得率(0.67 g/g);在5 L生物反应器中,乙酸积累至78.83 g/L、得率0.78 g/g,是目前报道的最高乙酸得率。
-
乙醇:Q6549-Et的乙醇滴度与得率分别达到30.37 mM和0.15 g/g,较原始菌株提升4倍以上。
-
甲羟戊酸(MVA):Q6549-MVA滴度9.02 g/L、得率0.56 g/g,超出天然理论得率(0.54 g/g),且副产物乙酸从6.26 g/L大幅降至0.59 g/L;5 L反应器中MVA积累至56.48 g/L、得率0.503 g/g,为报道的最高MVA得率。
-
聚羟基丁酸酯(PHB):Q6549-PHB产量4.52 g/L、得率0.44 g/g,副产物乙酸最低。
-
3-羟基丙酸(3HP):Q6549-3HP积累6.13 g/L、得率0.47 g/g,较亲本提升7.82倍;进一步用asRNA分层抑制副产物乙酸途径的ackA基因后,3HP得率再提升约1.4倍。

ATHENA的设计与验证。a. 代谢流双模块动态分配;b. 三种底盘对比;d–k. 乙酸、乙醇合成及NADH/NAD⁺、基因表达动态。

ATHENA在甲羟戊酸(MVA)、聚羟基丁酸酯(PHB)、3-羟基丙酸(3HP)合成中的应用。
同时,尽管MVA、PHB、3HP合成消耗的是NADPH而非NADH,ATHENA依然运行良好——其胞内NADPH/NADP⁺比值呈动态波动,说明大肠杆菌固有的NADH/NADPH互变能力足以支撑这套系统,进一步印证了ATHENA的普适性。
这项研究成功为构建高碳得率通用底盘细胞、助力碳中和目标下的生物制造提供了可推广的新范式。
中国科学院大连化物所、青岛生物能源所、广州能源所为本研究参与单位,山东大学生命环境研究公共技术平台在质谱分析方面给予了大力支持。该研究得到了国家重点研发计划、国家自然科学基金、泰山学者计划、微生物改造技术全国重点实验室前沿探索项目、大化所先进生物制造中心融合基金、博士后国资计划等资助。
论文链接:https://www.nature.com/articles/s41467-026-78191-8
 上一篇:新国大研究团队获1.16亿元资助,将木质纤维素转化为生物基特种聚合物
 下一篇:华南理工大学团队开发出高性能生物降解胶粘剂!强如聚酰胺,降解如聚酯
 沪公网安备31010102007662号